Chl-a 的谎言:Chl-a 浓度越高,生物量反而越低
在海洋研究中, 叶绿素浓度(Chl-a)长期被用作浮游植物生物量的 proxy。 一个重要原因在于,它既是浮游植物最核心、最易被捕获的生物光学量,又在经验上常被默认与 phytoplankton biomass 同步变化。然而,这种“默认”存在很大风险。因为 Chl-a 与 …
- Reference
- notes:n08
- Published
- 2026.04.25
- Series
- note
- Source
- Source ↗
在海洋研究中, 叶绿素浓度(Chl-a)长期被用作浮游植物生物量的 proxy。 一个重要原因在于,它既是浮游植物最核心、最易被捕获的生物光学量,又在经验上常被默认与 phytoplankton biomass 同步变化。然而,这种“默认”存在很大风险。因为 Chl-a 与 biomass 之间并非稳定的关系 ,而是一个受 physiology、light environment、nutrient regime 以及生态区差异共同约束的 conditional proxy relation。
01| Chl-a 与生物量会 decouple
Behrenfeld 等的研究是利用 satellite-derived carbon 估算海洋净初级生产的标志性工作之一。该文章在碳基遥感框架下系统地发现,Chl-a 与 biomass 并不总是同步变化。作者明确指出,传统海洋 NPP 估算之所以存在方法问题,关键就在于它们把 chlorophyll 当作 phytoplankton biomass 的 index,却没有充分处理 phytoplankton 会随 light、nutrients 和 temperature 改变细胞内 pigmentation、从而引起 Chl-a 与 biomass 表征关系变化这一事实(Behrenfeld et al.,Glob. Biogeochem. Cycles,2005)。
更关键的是,他们给出了区域尺度的季节证据:在很多低生产力海区,浮游植物 biomass 可以全年保持相对稳定,而 Chl-a 仍然表现出显著季节变化。这些变化 主要由浮游植物对环境条件变化的生理性调整所驱动 ,而不是由 biomass 本身的增减驱动。作者因此给出一个非常明确的判断: chlorophyll concentration is a poor proxy of phytoplankton biomass within large areas of the ocean 。 Chl-a 在很多情况下并不单纯表征 biomass,而是混入了 physiology 的信号,因此会与 biomass 发生实质性 decouple(Behrenfeld et al.,Glob. Biogeochem. Cycles,2005)。
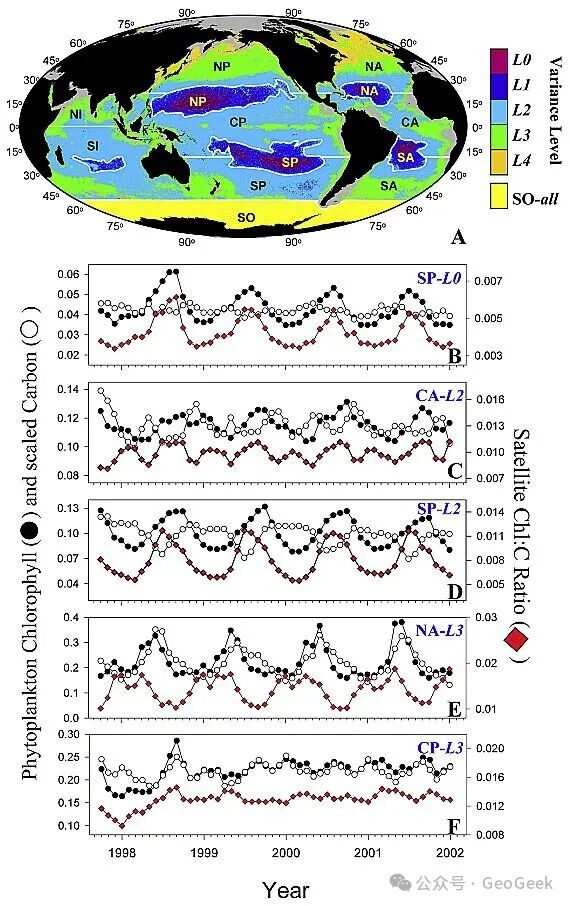
图1 | 基于不同海区的浮游植物叶绿素(Chl-a) 与生物量(biomass) 的区域划分与季节变化模式。 图(a)展示按海盆和叶绿素变率划分的 28 个区域海区;图(b)–(f)展示其中 5 种代表性的 Chl-a、biomass 及其相对关系的季节变化模式。该图显示,在若干低生产力海区,叶绿素的季节波动可以明显强于 biomass 的变化幅度,表明 Chl-a 与 biomass 之间存在 decouple。换言之,这些区域中的 Chl-a 变化并不必然对应浮游植物 biomass 的同步增减,而常常主要反映 phytoplankton physiology 对 light、nutrient 和 temperature 条件变化的响应。 (Behrenfeld et al.,Glob. Biogeochem. Cycles,2005,Fig. 2)。
02|这种 decouple 不是偶然
Chl-a 与 biomass 的 decouple会不会只是 局部现象? Siegel 等的研究 表明,这种 decouple 不是零散或偶发的,而是 具有明确空间结构、受区域与环境条件系统性支配的现象 。 该研究 将 satellite-derived chlorophyll variability 分解为两个部分:一部分来自 biomass变化,另一部分来自 physiology变化。 就该文的具体操作化而言, physiology 主要表现为 light-induced photoacclimation,即浮游植物随光环境变化调节其 Chl-a 含量。 结果显示,在高纬海区以及持续或季节性上升流区,Chl-a 变化通常主要由 biomass 变化驱动,因此在这些区域,Chl-a 仍可被视为一个相对可靠的 biomass proxy。 但在广阔的热带和副热带海洋中,主导 Chl-a 变化的往往不是 biomass accumulation,而是 phytoplankton 对光环境变化的生理响应(Siegel et al.,Remote Sens. Environ.,2013)。
文章进一步发现, 在一些 physiology-dominated 区域,代表 biomass 贡献的回归系数甚至出现负值,即 这 些海域 中 观察到 Chl-a 与 biomass 的反向关系 。这意味着 ,Chl-a 与 biomass 的关系 并非稳定不变 ,而且在不同生态区之间可能发生机制转换,甚至方向反转。所以, Chl-a→biomass 关系本身是 conditional、region-dependent、mechanism-switching 的proxy relation。 对一个会随生态区改变含义、在部分海域甚至可反向表征 biomass 的指标而言,将其视作稳定 proxy ,在方法论上显然是站不住脚的 (Siegel et al.,Remote Sens. Environ.,2013)。
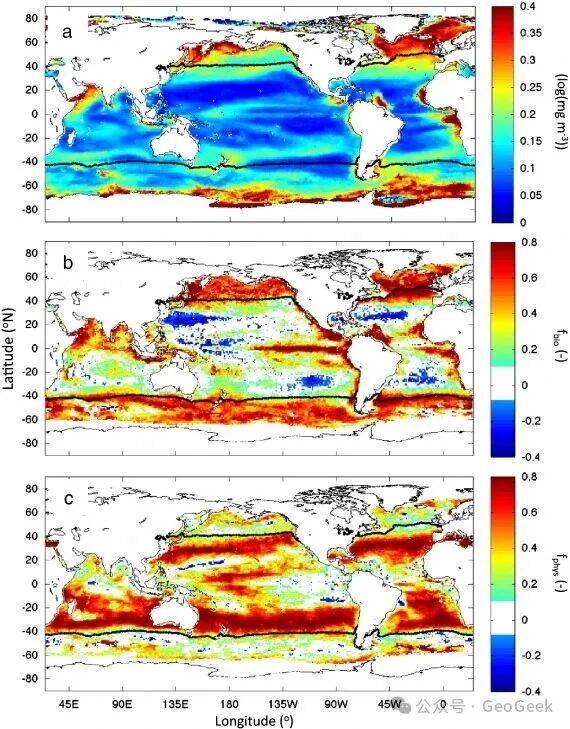
图2 | Chl-a variability 中 biomass 贡献(b)与 physiology 贡献(c)的全球分布 。 高纬及上升流区域中,Chl-a 变率主要由 biomass 驱动。而在广阔的热带和副热带海洋中,主导 Chl-a 变化的则是 physiology adjustment,其主要表现为 photoacclimation。该结果表明,Chl-a 作为 biomass proxy 的有效性具有明确的区域边界和环境条件约束 (Siegel et al.,Remote Sens. Environ.,2013,Fig. 8)。
如果说 Siegel 等说明的是 Chl-a→biomass 关系的空间不稳,那么 Behrenfeld 等随后的研究进一步说明,这种不稳定也存在于 Chl-a 的时间变化之中。 在全球变化研究中,一个常见现象是:Chl-a anomalies 往往与 sea surface temperature anomalies 呈负相关。也就是说,当海表温度升高时,Chl-a 往往下降。这个现象很容易被解释为:海洋变暖导致浮游植物 biomass 下降,进而导致 productivity 下降。 但作者指出,这一推断并不稳固。因为 Chl-a anomalies 不只包含 biomass signal,也包含 physiology signal。 尤其是在海洋变暖改变层化、混合层深度和光环境时,浮游植物可以通过 photoacclimation 调节 cellular pigmentation,从而改变 carbon-to-chlorophyll ratio,即 θ。这样一来,Chl-a 下降可能只是单位 biomass 中 chlorophyll 含量下降,而不必然意味着 biomass 同步下降 (Behrenfeld et al., Nat. Clim. Change ,2016)。
更关键的是,作者给出了全球尺度的量化证据。基于 MODIS Aqua 十多年数据,他们发现,在超过 75% 的海洋中,Chl-a interannual anomalies 的主要部分可以归因于 θ 的 physiological variation,而不是 biomass 变化;在约 40% 海洋中,θ 的变化甚至解释了超过 85% 的 Chl-a anomalies。也就是说,在全球大量海区中,Chl-a anomaly 首先是 physiology signal,而不是 biomass signal(Behrenfeld et al., Nat. Clim. Change ,2016)。
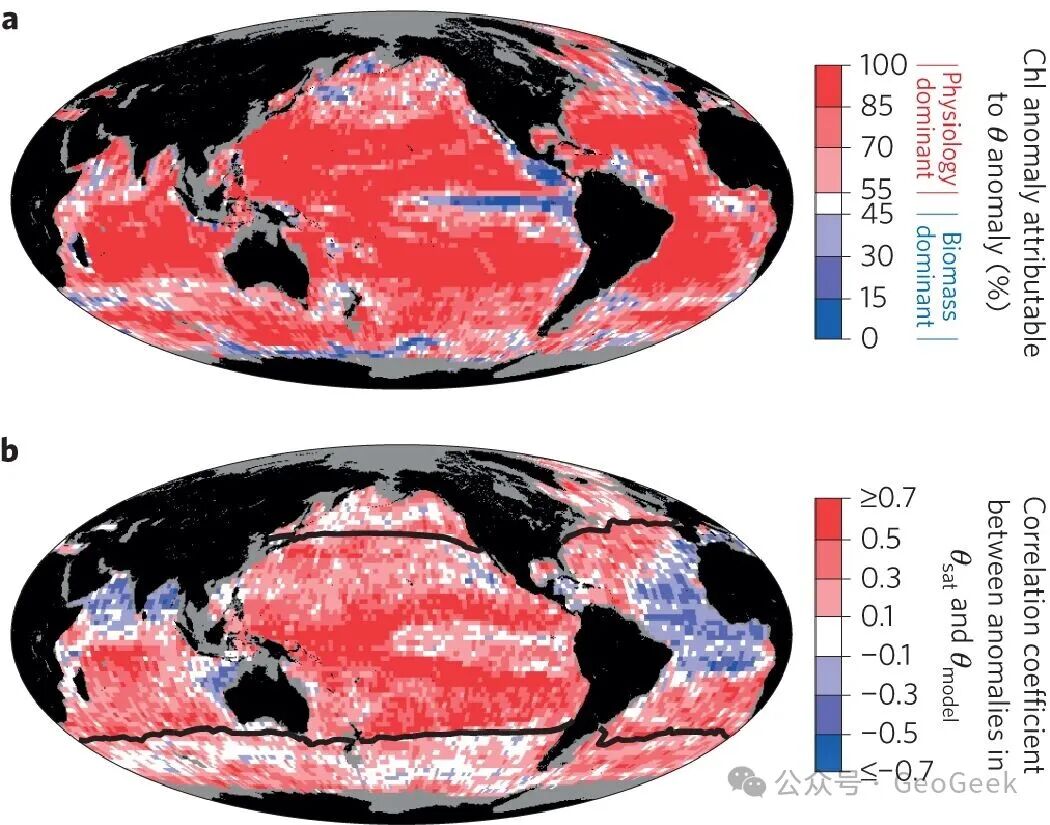
图3 | Chl-a anomalies 中由 physiological variation 解释的全球分布。 图 a 显示 Chl-a interannual anomalies 中由 θ anomalies 解释的比例,其中 θ 指 phytoplankton carbon-to-chlorophyll ratio。图 b 显示 observed θ anomalies 与 photoacclimation model-predicted θ anomalies 之间的相关性,说明 light-driven photoacclimation 是 θ anomalies 的重要来源之一。(Behrenfeld et al.,Nature Climate Change,2016,Fig. 5) 。
03| 忽视 decouple 会造成多大的系统误差 ?
如果忽视 Chl-a→biomass 的 decouple,偏差到底会有多大? Graff 等给出了最直接的经验回答。与 Behrenfeld 等(2005)和 Siegel 等(2013)主要依赖光学 proxy 路径来讨论 Chl-a 与 biomass 关系不同,Graff 等通过 sorting flow-cytometry 结合元素分析,对浮游植物生物量进行了更直接的经验测量,然后将该直接测得的 biomass 与 Chl-a 进行比较。这使得 Chl-a→biomass 这一第二层 proxy relation 不再只是间接推断的对象,而成为可以直接经验检验的对象。 文章发现,跨不同生态系统的 biomass:Chl-a ratio 横跨一个数量级:现场直接测量得到的范围为 31–358,而沿 AMT-22 航线基于 optically derived 结果的范围达到 35–408。作者进一步指出,仅就这一数据集而言,若对 Chl-a 采用单一的 phytoplankton carbon conversion factor,则会 在相当比例的海域造成最高达三倍的高估或低估 。所以,Chl-a→biomass 的 proxy 并不是一个近似粗糙但尚可接受的做法,而是在跨生态系统比较中会系统性地产生严重误差(Graff et al.,Deep-Sea Res. I,2015)。
Graff 等还发现,Chl-a 对直接测得 biomass 的解释力只有 R² =0.52,明显弱于 bbp 对 biomass 的解释力 R² =0.69。作者因此明确指出: Chl-a is not the best estimator of biomass 。换言之,问题并不只是 Chl-a 在特定条件下会受 physiology 影响,而是从 empirical performance 来看,它本身就不是一个稳定、优选的 biomass estimator(Graff et al.,Deep-Sea Res. I,2015)。 因此,Chl-a 不是浮游植物生物量的 stable proxy,而是一个受 physiology、environmental regime 和 ecosystem context 强烈约束的 conditional proxy 。 只有在特定区域、特定环境条件和特定机制主导关系下,Chl-a 才可能近似表征 biomass。一旦脱离这些条件,把 Chl-a 视作 biomass 的通用代理,便缺乏充分的方法论正当性。
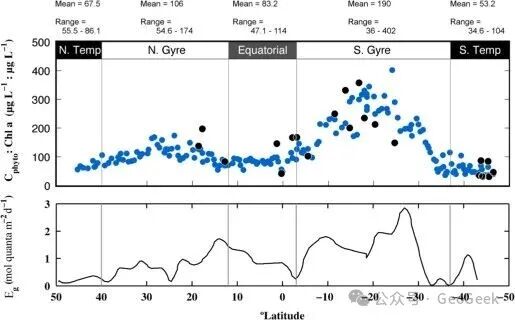
图4 | 沿 AMT-22 航线的 biomass : Chl-a ratio 变化。 该比值跨越一个数量级,显示 Chl-a 与直接测得的 浮游植物生物量 之间不存在稳定的单一转换关系。若采用统一 conve rsion factor,将导致对 biomass 的显著系统误判( Graff et al.,Deep-Sea Res. I,2015 ,Fig. 6)。
写在最后
遥感关于目标环境对象 O 的知识并不是直接观测所得,而是通过参考变量 M 间接实现的:观测信号 X 先经反演算子 F 生成对 M 的估计 R,然后再通过表征关系 P 及其成立条件 C,由 M 去解释 O。 因此,关于 O 的结论只有在 第一层 “R≈M” 与 第二层 “M→O∣C” 同时成立时,才具有方法论上的正当性。更多请阅读: 遥感何以看见,又何以未见:Proxy of a Proxy
遥感应用研究往往把注意力集中在第一层,即 “R≈M” 是否成立,关注算法输出是否准确逼近反演对象,诸如精度、偏差、RMSE、 R² 等指标通常也主要服务于这一层的验证。然而,对于目标环境对象 O 的解释而言,仅有第一层有效性并不充分。即便遥感已经高精度地反演了参考变量 M,也并不意味着研究者已经可靠地认识了 O。真正容易被忽视、但同样决定结论能否成立的,是第二层 “M→O∣C”:参考变量 M 是否能够在特定条件 C 下稳定表征目标对象 O。如果这一层关系本身是不稳定的、条件敏感的,或在不同生态区之间发生机制转换,那么即便第一层反演精度很高,关于 O 的结论仍可能是不稳固的。就本文讨论的案例而言,问题不在于 Chl-a 能否被成功反演,而在于: 即便 Chl-a 被准确反演出来,它是否仍能作为浮游植物生物量的稳定 proxy 。 这正是 “Proxy of a Proxy” 理论所要强调的关键:遥感研究不能止于证明自己“看准了 M”,还必须进一步证明 M 在条件 C 下“确实代表了 O”。
References
Behrenfeld, M. J., Boss, E., Siegel, D. A., Shea, D. M. Carbon-Based Ocean Productivity and Phytoplankton Physiology from Space. Global Biogeochemical Cycles , 19, GB1006 (2005).
Siegel, D. A., Behrenfeld, M. J., Maritorena, S., McClain, C. R., Antoine, D., Bailey, S. W., Bontempi, P. S., Boss, E. S., Dierssen, H. M., Doney, S. C., et al. Regional to global assessments of phytoplankton dynamics from the SeaWiFS mission. Remote Sensing of Environment , 135, 77–91 (2013).
Graff, J. R., Westberry, T. K., Milligan, A. J., Brown, M. B., Dall’Olmo, G., van Dongen-Vogels, V., Reifel, K. M., Behrenfeld, M. J. Analytical phytoplankton carbon measurements spanning diverse ecosystems. Deep-Sea Research Part I: Oceanographic Research Papers , 102, 16–25 (2015).
Behrenfeld, M. J., O’Malley, R. T., Boss, E. S., Westberry, T. K., Graff, J. R., Halsey, K. H., Milligan, A. J., Siegel, D. A., Brown, M. B. Revaluating ocean warming impacts on global phytoplankton. Nature Climate Change , 6, 323–330 (2016).